Các loài muỗi Anopheles ở Đông
Phức hợp Fluviatilis (nhóm Funestus, Myzomyia Series):
Các nghiên cứu phân loại tế bào về các đão đoạn cố định trên nhiễm sắc thể nhiều sợi (polytene chromosome) đã xác định có 3 kiểu nhiễm sắc thể trong phức hợp Fluviatilis là An. fluviatilis S, T và U, thường gọi là loài đồng hình (sibling species.
Việc phân loại phức hợp Fluviatilis vẫn còn nhiều bất cập do sự xuất hiện của các biến thể phân tử (chủ yếu dựa vào sự khác nhau về trình tự ITS2), bao gồm loài X ở bang Orissa, Ấn Độ và kiểu V được ghi nhận chỉ có ở Iran (tỉnh Hormozgan). Kỹ thuật AS‐PCR dựa vào sự khác nhau về trình tự của vùng D3 của ADN ribosome 28S có thể dùng để phân biệt các thành viên của phức hợp. Kỹ thuật này cần được áp dụng trên diện rộng để xác định chính xác sự phân bố của từng loài trong phức hợp.
Phức hợp Minimus và Fluviatilis có quan hệ gần nhau về phả hệ. Dựa vào các dữ liệu hình thái và sự so sánh mới đây về trình tự vùng D3 của An. fluviatilis S và An. harrisoni, hai loài này từng được cho là cùng một loài. Tuy nhiên kết luận này đã bị Singh và cs. (2006) bác bỏ, do ông đã tìm thấy khoảng cách so sánh theo cặp (pair‐wise distance) của chuỗi ITS2 là 3,6% và của locus 28S‐D2/D3 là 0,7% giữa các loài. Theo Singh và cs., An. fluviatilis S khác với An. harrisoni, loài không có mặt ở Ấn Độ.
Có ít thông tin về đặc điểm sinh học, sinh thái và phân bố của các loài này ngoài Ấn Độ. Phức hợp Fluviatilis được phân bố rộng rãi ở các vùng rừng đồi thấp của tây‐nam châu Á. Tuy nhiên, sự phân bố theo các dạng nhiễm sắc thể được nghiên cứu kỹ ở Ấn Độ và Iran. Loài T có phân bố rộng nhất, bao gồm Ấn Độ, Nepal, Pakistan và Iran. Loài U được ghi nhận ở miền bắc Ấn Độ và Iran. Phức hợp Fluviatilis và phức hợp Minimus có sự phân bố chồng nhau ở Ấn Độ đến Myanmar, nhưng ranh giới của sự chồng chéo này chưa được biết chính xác.
An. fluviatilis chủ yếu ưa gần người (90%) và thích sống trong nhà, và được biết là loài có khả năng truyền sốt rét cao, đứng thứ 2 sau An. culicifacies loài. An. fluviatilis T và U chủ yếu ưa máu động vật (99%), tiêu máu ngoài nhà và thích sống ngoài nhà, và được xem như ít hoặc không có vai trò truyền bệnh, mặc dù loài T được biết là có vai trò trong việc duy trì sốt rét ở các vùng đồi và núi của Ấn Độ, Pakistan, Iran và Nepal. Các thành viên của phức hợp Fluviatilis có giới hạn ở vùng rừng, đặc biệt là vùng núi, đồi và chân đồi của tây nam châu Á (Iran, Pakistan, Afghanistan, Ấn Độ, Nepal, Bangladesh và Myanmar). Một nghiên cứu so sánh vùng có rừng và vùng rừng bị tàn phá ở bang Orissa, Ấn Độ cho thấy An. fluviatilis S chiếm ưu thế ở vùng có rừng (98% là loài S và 2% là T), trong khi đó thì thành viên của phức hợp này gần như vắng mặt ở vùng rừng bị tàn phá.
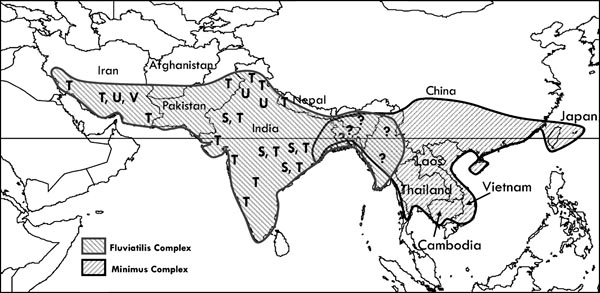 |
| Hình 1: Phân bố của phức hợp Fluviatilis và Minimus (Maguin và cs., 2008) |
Phức hợp Culicifacies (nhóm Funestus, Myzomyia Series)
Cũng giống như phức hợp Fluviatilis, việc phân loại phức hợp Culicifacies vẫn chưa được giải quyết. Phức hợp này bao gồm 5 kiểu nhiễm sắc thể, được đặt tên là loài A, B, C, D và E. các thành viên của phức hợp này được xác định về di truyền tế bào bằng các đão đoạn cận tâm(paracentric inversion) của các nhiễm sắc thể nhiều sợi (polytene chromosome)
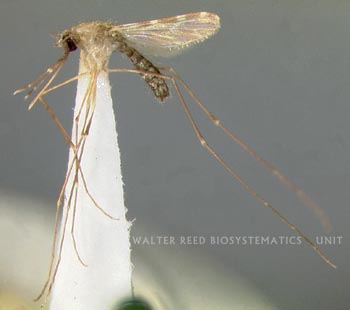 |
| Anopheles culicifacies. (nguồn: http://www.wrbu.org) |
Phức hợp Culicifacies phân bố rộng rãi tự phía nam Trung Quốc, Việt Nam, Lào, Campuchia, Thái lan và Myanmar đến Ấn Độ, Pakistan và Iran với một sự mở rộng về hướng tây vào bán đảo Arabian và Ethiopia. Tương tự với phức hợp Fluviatilis, các đặc điểm sinh học, sinh thái của các loài được nghiên cứu nhiều ở Ấn Độ còn dữ liệu này đối với các vùng khác còn đang thiếu.
Bốn loài trong phức hợp là loài A, B, D và E là các vector truyền sốt rét chính ở Ấn Độ. trong đó loài E là có khả năng vector cao nhất. Loài B thì ít hoặc không có vai trò truyền bệnh. Phân bố của loài này là rộng nhất trong tất cả các loài‐ có mặt từ Iran đến Trung Quốc và là loài duy nhất trong phức hợp có ở các vùng phía đông, bao gồm phía nam Trung Quốc (Sichuan), Việt Nam, Lào, Campuchia và tây bắc Thái Lan. Về phía Tây, loài B có mặt trong cùng vùng phân bố với các loài khác trong phức hợp, đặc biệt là loài E, là vector truyền sốt rét quan trong nhất ở phía nam Ấn Độ và
 |
| Hình 2: Phân bố của các loài trong phức hợp Culicifacies (Maguin và cs., 2008) |
An. culicifacies s.l. là nguyên nhân của sự lan truyền bệnh sốt rét ở Ấn Độ, chủ yếu do loài E, là loài thích gần người cao (90%) và thích sống trong nhà (endophilic). Loài A, C và D chủ yếu ưa động vật, có chỉ số thích gần người thấp không vượt quá 3‐4%. Vì thế 3 loài này đóng vai trò thứ yếu trong sự truyền bệnh sốt rét, mặc dù loài C được biết là nguyên nhân của sự lan truyền sốt rét ở địa phương thuộc các vùng ven sông bị khai hoang của trung tâm Ấn Độ (central India). An. culicifacies s.l. có mặt ở các kiểu sinh thái khác nhau, như rừng có suối chảy quanh năm và các hệ thống sinh thái ven sông của rừng bị khai hoang (đồi và đồng bằng) hoặc các vùng có tưới tiêu.
Nghiên cứu của Nanda và cs. (2000) ở bang Orissa (Ấn Độ) về so sánh các hệ sinh thái ở vùng rừng và rừng bị khai hoang cho thấy các mẫu An. culicifacies s.l. không giống như ở phức hợp Fluviatilis, chúng có mặt ở cả 2 hệ sinh thái. Ở vùng rừng, An. culicifacies C (71%) nhiều hơn loài B, ở các vùng rừng khai hoang loài C (78%), B (21%) và loài A (1%). Điều này cũng cho thấy rằng loài An. culicifacies C thích nghi với sự thay đổi của môi trường.
Tài liệu tham khảo:
1. Chen B., Butlin R.K., Pedro P.M., Wang X.Z., Harbach R.E. 2006. Molecular variation, systematics and distribution of the Anopheles fluviatilis complex in southern
2. Garros C., Harbach R.E., Manguin S. 2005a. Morphological assessment and molecular phylogenetics of the Funestus and Minimus Groups of Anopheles (Cellia). J. Med. Entomol. 42, 522‐536.
3. Goswani G., Raghavendra K., Nanda N., Gakhar S.K., Subbarao S.K. 2005. PCR‐RFLP of mitochondrial cytochrome oxidase subunit II and ITS2 of ribosomal DNA: markers for the identification of members of the Anopheles culicifacies complex (Diptera: Culicidae). Acta Trop. 95, 92‐99.
4. Manguin S. , Garros C., Dusfour I.., Harbach R.E., Coosemans M. 2008.Bionomics, taxonomy, and distribution of the major malaria vector taxa of Anopheles subgenus Cellia in
5. Naddaf S.R., Oshagi M.A., Vatandoost H., Assmar M. 2003. Molecular characterization of Anopheles fluviatilis species complex in the Islamic Republic of Iran.
6. Nanda N., Yadav R.S., Sahu S.S., Sharma S.K., Malhotra M.S. 2005.Anopheles fluviatilis species S related malaria in hyperendemic districts of Orissa state, India. In: International Conference on Malaria,
7. Nanda N., Yadav R.S., Subbarao S.K., Joshi H., Sharma V.P. 2000. Studies on Anopheles fluviatilis and Anopheles culicifacies sibling species in relation to malaria in forested hilly and deforested rive rine ecosystems in northern
8. Singh O.P., Chandra D., Nanda N., Raghavendra K., Sunil S., Sharma S.K., Dua V.K., Subbarao S.K. 2004. Differentiation of members of the
9. Singh O.P., Chandra D., Nanda N., Sharma S.K., Htun P.T., Adak T., Subbarao S.K., Dash A.P. 2006. on the conspecificity of Anopheles fluviatilis species S with Anopheles minimus species C. J. Biosci. 31, 671‐677.
10. Surendran S.N., Ramasamy R. 2005. Some characteristics of the larval breeding sites of Anopheles culicifacies species Band E in SriLanka. J. Vec. Borne Dis. 42, 39‐44.
11. Trung H.D., VanBortel W., Sochanta T., Keokenchanh K., Quang N.T., Cong L.D., Coosemans M. 2004. Malaria transmission and major malaria vectors in different geographical areas of
12. Van Bortel W., Sochanta T., Harbach R.E., Socheat D., Roelants P., Backeljau T., Coosemans M. 2002. Presence of Anopheles culicifacies B in