Theo Tổ chức Y tế thế giới (WHO) đến nay sốt rét vẫn là một vấn đề sức khỏe nghiêm trọng trên thế giới cũng như Đông Nam Á, theo đó cần thiết phải có nhiều nghiên cứu về vector sốt rét và kiểm soát vector ở một số quốc gia thuộc khu vực này như Malaysia, Myanmar, Thái Lan…
Liên bang
 |
Một số bệnh do vector truyền vẫn còn nghiêm trọng ở
Chương trình đã thành công trong việc giảm đáng kể lan truyền sốt rét với số ca giảm từ 181.495 ca lúc bắt đầu chương trình MEP vào năm 1967 xuống còn 44.226 ca đến cuối chương trình vào năm 1980. Năm 1983,
 |
Hiện nay, bệnh sốt rét vẫn là một trong những bệnh do vector truyền quan trọng nhất ở
Hầu hết các ca sốt rét là do Plasmodium vivax (48.15%), tiếp đến là P. falciparum (26,75%), P. knowlesi (13,01%), P. malariae (8.37%) và nhiễm phối hợp (3,68%) [97],[2]. Gần đây, Plasmodium knowlesi đã được công nhận như loài sốt rét quan trọng được lan truyền từ động vật sang người ở miền đông Malaysia (Borneo) và các ổ dịch đã được tìm thấy chủ yếu ở Borneo, Sarawak và Sabah và Tây Malaysia [100] cũng như các quốc gia khác khu vực Đông Nam Á. Tại Malaysia, loài An. latens và An. cracens (cả hai thuộc thành viên của nhóm An. leucosphyrus) là hai vector chính truyền P. knowlesi [101],[102],[103].
Malaysia đã đưa ra chương trình kiểm soát vector quốc gia bao gồm mục tiêu sử dụng phun tồn lưu trong nhà (IRS), phân phối màn ITNs, thuốc điều trị sốt rét kết hợp dựa vào artemisinin, diệt bọ gậy của các vector sốt rét ở trong môi trường thủy sinh, các biện pháp quản lý môi trường và các phương pháp bảo vệ cá nhân [104]. Sau nhiều năm sử dụng hóa chất diệt côn trùng để kiểm soát vector, phát triển kháng sinh lý đối với hóa chất diệt côn trùng đã được phát hiện ở một số vector sốt rét. Hii (1984) đã báo cáo loài An. balabacensis tăng sức chịu đựng với DDT và nhiều năm sau đó một số loài anopheline khác cũng đã phát triển kháng với DDT và permethrin [105].
Vector sốt rét tại
Malaysia, có 75 loài Anopheles đã được ghi nhận nhưng chỉ có 9 loài trong tổng số 75 loài là vector sốt rét gồm An. balabacensis và An. latens (cả phức hợp Leucosphyrus), An. cracens (Phức hợp Dirus), An. maculatus (Nhóm Maculatus Group), An. letifer, An. campestris, An. sundaicus và An. epiroticus (cả Phức hợp Sundaicus), An. donaldi và An.flavirostris [96]. Mỗi loài được xem là một vector sốt rét ở các vùng khác nhau, đôi khi chúng cùng tồn tại trong cùng một vùng phân bố (Bảng 1).
| Bảng 1. Các vector truyền bệnh sốt rét ở | ||||||||||||||||||||||||||||||
|
Anopheles maculatus nằm trong nhóm loài gồm ít nhất 9 loài liên quan đến di truyền [39]. Trong lịch sử, An. maculatus là vector chính lan truyền sốt rét ở Tây
 |
Anopheles campestris thuộc phân nhóm Barbirostris (giống phụ Anopheles) và là một vector tiềm năng truyền bệnh sốt rét và giun chỉ bạch huyết, đặc biệt dọc theo bờ biển phía tây của bán đảo
Anopheles cracens (trước đây là An. dirus B), là một thành viên của Phức hợp loài Dirus, chỉ tìm thấy trong ở khu vực đất
Bọ gậy Anopheles letifer thích sống trong nước tù động màu nâu sẫm (thường có tính axit), tìm thấy trong các đầm lầy than bùn, đặc biệt ở rừng nhiệt đới bị tàn phá dọc ven rừng, có hoặc không có bóng râm. Những vùng trồng dầu cọ cũng là môi trường sống cho An. letifer liên quan đến việc mở và chặn đầm lầy [115]. Bán đảo
 |
Anopheles epiroticus (trước đây là loài An. sundaicus A) và An. sundaicus s.s. là những thành viên của Phức hợp loài Sundaicus [117] và được xem là vector sốt rét quan trọng ở các khu vực ven biển[106],[118],[44]. Ở bán đảo
 |
Anopheles donaldi là một trong số các vector sốt rét chính ở
Anopheles balabacensis, một thành viên của Phức hợp Leucosphyrus, được xem là vector sốt rét chính ở
Anopheles flavirostris là vector sốt rét ở
Tác động của sự thay đổi các điều kiện môi trường đến vector sốt rét và lan truyền bệnh
 |
Myanmar (trước đây gọi là Burma: Miến Điện) có tổng diện dích 678,500 km², có biên giới với 3 quốc gia gồm 193 km với Bangladesh 2,185 km với Trung Quốc; 1,463 km với Ấn Độ; 1,800 km với Thái Lan và một đoạn đường biên tương đối nhỏ giáp với Lào. Về mặt hành chính,
Sự di dân qua biên giới quốc tế thông qua các điểm cụ thể đi vào từ Myanmar bao gồm Tachilek, Myawaddy và Kawthaung, Thái Lan Muse, Namkhan và Khukok, Trung Quốc; Tamu, Ấn Độ; và Maungdaw, Bangladesh. Cũng có những điểm ít quan trọng khác vào Thái Lan, nơi người dân Thái và Miến Điện thường chỉ cần thông qua biên giới hợp lệ để vượt qua các điểm kiểm tra chính thức. Tại Mae Sai, khoảng 60.000 người Thái và 30.000 người Miến Điện qua lại biên giới vào năm 1997. Đó là một trong những lý do quan trọng giải thích tại sao tỷ lệ mắc bệnh sốt rét và tử vong sốt rét dọc theo biên giới Thái Lan‐Myanmar đặc biệt cao và dai dẵng đối với hầu hết các phương pháp kiểm soát [127] và đó là lý do giải thích tại sao bệnh đạt đỉnh điểm cao nhất giai đoạn năm 1988 và 1991 [128].
Sốt rét là một vấn đề y tế công cộng nghiêm trọng tại
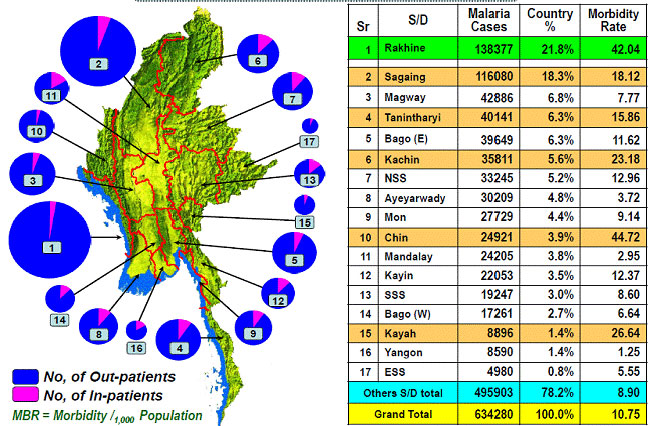
Trong năm 2008, bang Chin báo cáo tỷ lệ mắc bệnh cao nhất 44,7/1.000 dân, trong khi đó số ca mắc cao nhất đã được báo cáo ở bang Rakhine, tiếp theo là bang Sagaing[130],[131].
Nhìn chung, các đỉnh lan truyền bệnh sốt rét ngay trước và sau những cơn mưa gió mùa thường xảy ra từ tháng 6 đến tháng 9. Các nhóm dân cư có nguy cơ cao nhất bao gồm: 1) những người sống hoặc di chuyển vào vùng có nguy cơ sốt rét cao, đặc biệt là dọc theo biên giới 2) người di cư quốc tế hoặc người lao động tham gia khai thác, sản xuất nông nghiệp (ví dụ, các đồn điền cao su), việc xây dựng các đập nước, đường giao thông, các công trình thủy lợi; 3) những người làm nông hoặc liên quan đến công việc gần hoặc trong rừng và dọc theo ven rừng như khai thác gỗ và tre; 4) phụ nữ mang thai và trẻ em dưới 5 tuổi; và 5) các dân tộc thiểu số sống ở những khu vực vùng sâu vùng xa với khả năng tiếp cận dịch vụ chăm sóc sức khỏe ban đầu khó khăn. Trong tổng dân số 60 triệu người, tỷ lệ dân cư sống dưới mức độ nguy cơ sốt rét hay không có sốt rét như sau: nguy cơ cao 37%, nguy cơ thấp 23% và không có nguy cơ 40% [3]. Tổng cộng 36 thị trấn có tỷ lệ tử vong cao hơn 4% trong các trường hợp được chẩn đoán [132]. Số lượng đáng kể các dân tộc thiểu số (khoảng 100.000) sống trong các trại tị nạn bán kiên cố dọc theo biên giới Thái ‐
 |
| Hình 3. Tỷ lệ tử vong và tỷ lệ mắc sốt rét ở Myanma giai đoạn 1988 ‐ 2008 |
Tất cả 4 loài Plasmodia nhiễm ở người (P. falciparum, P. vivax, P. malariae và P. ovale) đều có mặt tại
Nhiễm ký sinh trùng sốt rét lan truyền từ động vật sang người này có thể đã nhiễm tại huyện
Vector sốt rét và đa dạng loài
Do
|
Tập tính muỗi Anopheline
Nhiều nghiên cứu gần đây về sự phân bố và các đặc điểm sinh thái học muỗi Anopheline ở
Bọ gậy/lăng quăng được tìm thấy ở các vũng nước dọc theo bờ suối có nhiều bóng râm và trong các hốc tre đã bị chặt. Muỗi trưởng thành phong phú vào các tháng gió mùa với mật độ đạt đỉnh xảy ra từ tháng 9 đến tháng 10. An. dirus s.l. cũng đã được tìm thấy nghỉ ngơi vào ban ngày trong các đường nứt và thảm thực vật xung quanh các bức tường bên trong giếng nước và trên mặt dưới của lá chuối. Hành vi muỗi trưởng thành cho thấy, loài này hoạt động ngoài nhà rất cao và đốt cả người và gia súc. Một nghiên cứu trước đây [139] đã báo cáo xu hướng ưa đốt động vật cao hơn mặc dù những vị trí sinh sản được tìm thấy gần nơi ở của con người. Đỉnh đốt ngoài nhà xảy ra từ 21 giờ đến 3 giờ [139]. Kết quả mổ dạ dạy và tuyến nước bọt của muỗi để xác định tỷ lệ nhiễm tự nhiên ở các địa phương khác nhau giao động từ 0,4‐2,8%. Tỷ lệ nhiễm cao nhất cho mổ dạ dạy là 0,4% (1/250) và mổ tuyến nước bọt là 2,4% (6/250).
Đối với An. minimus s.l., mật độ muỗi trưởng thành khác nhau theo mùa, mặc dù muỗi trưởng thành phong phú cả năm ở nhiều địa điểm khác nhau [136]. Tỷ lệ muỗi An. minimus s.l. cao nhất xảy ra những tháng sau gió mùa từ tháng 10 đến tháng 12. Muỗi trưởng thành thích nghỉ trong nhà và nơi sống của gia súc trong thời gian ban ngày. An. minimus s.l. ưu thích đốt máu người vào các giai đoạn khác nhau trong năm và các địa điểm khác nhau. Thậm chí khi có mặt gia súc, chỉ một tỷ lệ nhỏ muỗi xuất hiện chuyển sang đốt người. Anopheles minimus s.l. đốt máu chủ yếu đầu hôm bắt đầu trước 21 giờ và đạt đỉnh hoạt động đốt mồi trước hoặc sau nửa đêm. Tuy nhiên, khi mật độ muỗi trưởng thành cao, các quần thể muỗi An. minimus s.l. sẽ đốt suốt đêm (cả trong và ngoài nhà) với hoạt động tích cực nhất vào những giờ đầu hôm và giảm dần cho đến sáng (6:00 giờ). Tỷ lệ nhiễm ở cả dạ dạy và tuyến nước bọt đã được báo cáo là khác nhau từ 1,1‐3,0%. Anopheles minimus s.l. chủ yếu ở vùng đồi núi, đến các thung lũng sông hẹp ở các khu vực nhiều núi hơn nó không có mặt tại các địa điểm ở độ cao trên 915 m so với mực nước biển. Khi tìm thấy ở các vùng địa hình thấp, nó luôn luôn kết hợp với các hệ thống thủy lợi.
Anopheles aconitus là vector phụ ở một số địa điểm nhất định và là loài khá phong phú từ tháng 10 đến tháng 2, đạt đỉnh vào tháng 11 [136]. Từ tháng 3 đến tháng 9 nó rất hiếm khi được bắt gặp. An. aconitus phổ biến hơn ở những vùng đồi núi, chân đồi và cũng ở các vùng đồng bằng miền trung và miền nam
Tỷ lệ muỗi An. aconitus nhiễm KSTSR là 0,2% (1/350) [136]. An. annularis s.l. đã được tìm thấy ở vài địa phương có mật độ trưởng thành cao. Nước đọng với các cạnh có nhiều cỏ trong các hồ cố định, các hố nước trên mặt đất, các bể chứa nước, đầm lầy, cống ứ đọng và ruộng lúa là môi trường sống phổ biến của bọ gậy/lăng An. annularis. Sự phong phú của nó thay đổi theo lượng mưa. Tại các khu vực ven biển có mưa lớn (từ 3.800 mm đến 5.150 mm hàng năm), mật độ An. annularis thường tăng từ tháng 10 đến tháng 01. Loài này thích đốt gia súc (80‐90%) và hoạt động đốt mồi chủ yếu từ 18 giờ đến 24 giờ. Tỷ lệ dạ dạy muỗi An. annularis nhiễm KSTSR là 0,1‐0,2% (350‐700 mẫu) [136].
 |
An. culicifacies s.l. là một vector sốt rét nghi nghờ ở miền trung
Khi mật độ muỗi trưởng thành cao, An. sinensis là vector phụ dọc biên giới
 |
An. maculatus s.l. đã được báo cáo là vector sốt rét chính, đặc biệt ở khu vực Tanintharyi và các nơi khác thì vector phụ phụ thuộc vào địa phương. Mật độ loài này cao nhất gần như ở tất cả các khu vực, nó xảy ra vào tháng 1 (mùa khô lạnh). Số lượng bắt đầu gia tăng vào cuối gió mùa tây nam vào đầu tháng 10 và tương đối hiếm trong thời gian hai mùa giò mùa hàng năm. Chỉ có một trường hợp ngoại lệ ở khu vực
Tuy nhiên, vào thời điểm có mật độ cao, An. maculatus có thể thu thập ở chuồng gia súc. Thành viên các loài này đốt cả con người và động vật khác nhau, chủ yếu đốt đầu hôm bắt đầu lúc 18:00 giờ. Tỷ lệ dạ dạy nhiễm KSTSR là 0,5% (1/180). Anopheles maculatus chủ yếu được ghi nhận từ các chân đồi rừng, xung quanh các lán trong rừng sâu và trong vùng núi ở độ cao 1.200m so với mực nước biển và thường không được tìm thấy ở các vùng thấp xa các môi trường chân đồi.
Anopheles philippinensis là vector có tầm quan trọng thứ yếu gần biên giới Myanmar‐Bangladesh. Loài này không được tìm thấy nghỉ ở các nhà và chuồng gia súc vào ban ngày và có lẽ chọn địa điểm tự nhiên ngoài trời. An. philippinensis chỉ được tìm thấy nghỉ trong nhà vào trong thời gian thu thập muỗi vào buổi sáng. An. philippinensis là một loài ưa đốt động vật (zoophilic) và chủ yếu là đốt gia súc. Tại các khu vực nơi mà gia súc vừa hiếm vừa không có mặt, thì loài này sẽ đốt người. Ở Làng Innwaing (Mawlamyine Township, bang Mon) và Patheingyi Township An. philippinensis đã được báo cáo với số lượng lớn trong những tháng sau gió mùa từ tháng 9 đến tháng 11 [136].
An. sundaicus s.l. là vector phụ được giới hạn ở vùng ven biển, nơi môi trường sống của ấu trùng chủ yếu nằm ở đầm phà có ánh nắng mặt trời, hồ chứa nước ngọt và nước lợ tự nhiên và các dòng suối, thường với thảm thực vật thủy sinh rậm rạp (tảo nổi) và các khu vực nước lợ. Sự phong phu theo mùa của An. sundaicus s.l. thường tăng giữa tháng 5 và tháng 7 và một lần nữa vào tháng 10 đến tháng 2. Loài này được ghi nhận số lượng trung bình từ nhà và chuồng gia súc từ thu thập ban ngày. Loài này đốt cả người và gia súc. Khu vực Chaungthar và Seikgyi ở vùng Ayeyarwady, An. sundaicus s.l. có tỷ lệ dạ dày nhiễm oocyst là 0.4% (lần lượt 1 mẫu nhiễm oocyst/220 mẫu và 1 mẫu dương tính/230). Dọc theo biên giới Myanmar‐Bangladesh ở bang Rakhine, tổng cộng 202 mẫu muỗi đã được mổ thì tỷ lệ mẫu có tuyến nước bọt dương tính là 0,5% [136].
 |
Chương trình phòng chống sốt rét quốc gia Myanmar nhằm đạt được các Mục tiêu Phát triển Thiên niên kỷ của Tổ chức Y tế thế giới về ngăn chặn sự gia tăng các trường hợp mắc bệnh sốt rét vào năm 2015 và đẩy lùi đáng kể tỷ lệ mắc bệnh sốt rét sau đó. Các phương pháp chính để kiểm soát vector sốt rét tại các vùng dịch tễ sốt rét của
Kiểm soát sinh học bằng cách sử dụng hai loài cá ăn thịt (ăn bọ gây/lăng quăng) là Poecilia reticulata và Aplocheilus panchax cũng có hiệu quả trong môi trường thủy sinh nhất định. Hợp tác liên ngành với sự tham gia của cộng đồng và giáo dục sức khỏe cũng là một phần của phương pháp tổng hợp này để làm giảm lan truyền bệnh [131].
Mặc dù hóa chất diệt côn trùng là một thành phần quan trọng trong các hoạt động kiểm soát bệnh sốt rét ở
 |
Ảnh hưởng của thay đổi các điều kiện môi trường đến vector sốt rét và lan truyền bệnh
Kể từ khi Nay Pyi Taw là thủ đô hành chính mới của Myanmar được mở vào tháng 11 năm 2005 bao gồm di dời tất cả các bộ của chính phủ khoảng 320 km về phía bắc của Yangon. Thay đổi cơ sở hạ tầng lớn này đã có một tác động lớn đến các đặc điểm sử dụng đất trong khu vực với các tòa nhà mới một mạng lưới đào tạo kết nối, đường giao thông và các dự án khác [85]. Thay đổi sử dụng đất có thể tạo ra môi trường sống mới lý tưởng cho muỗi đẻ, việc mở rộng hoặc giảm phân bố vector và thay đổi thành phần của vector trong một khu vực [141]. An. dirus s.l. và An. minimus s.l. là các vector sốt rét chính ở các vùng đồi núi
Thiếu thông tin chính xác về tác động của thay đổi môi trường đến vector sốt rét ở
Thái Lan
Thái Lan là quốc gia có tổng diện tích lớn thứ 51 trên thế giới (513.120 km²), với tổng dân số gần 67 triệu người. Thái Lan có đường biên giới với nhiều quốc gia gồm
 |
Mặc dù trong nhiều thập kỷ đã thành công trong việc giảm số ca mắc bệnh sốt rét trên phạm vi cả nước nhưng hiện nay, bệnh sốt rét vẫn là nguyên nhân chính gây ra nhiều ca mắc và tử vong. Khoảng 32 triệu người ở khu vực biên giới Thái Lan (50% dân số của Thái Lan) có nguy cơ mắc bệnh sốt rét. Tất cả bốn loại ký sinh trùng sốt rét đều có mặt trong đó phổ biến nhất là sốt rét do P. vivax chiếm 60% tổng số ca nhiễm được báo cáo trong năm 2011 [3].
Kể từ năm 1997, tỷ lệ nhiễm P. falciparum và nhiễm P. vivax đã được ghi nhận gần bằng nhau[70] (Hình 5). Những khu vực biên giới kém phát triển giữa Thái Lan và Đông
Công nhân không có miễn dịch là những người di chuyển qua biên giới quốc tế vẫn là những cộng đồng mẫn cảm nhất và dễ bị tổn thương. Sự di chuyển liên tục của nhóm dân cư này để khai thác đá quý, khai thác gỗ, nông nghiệp, xây dựng và các hoạt động khác, đã giúp gia tăng sự lan truyền ký sinh trùng P. falciparum đa kháng thuốc ở trong khu vực.
Sự bùng phát các đợt dịch sốt rét nghiêm trọng đã xảy ra ở các khu vực có nguy cơ cao dọc theo biên giới Thái Lan‐Myanmar, đặc biệt ở tỉnh Kanchanaburi và tỉnh Tak [70],[143]. Trong bốn tỉnh miền nam Thái Lan, các trường hợp mắc bệnh sốt rét đã tăng lên gần 4.000 trường hợp mỗi năm tại vùng giáp biên giới Malaysia, nơi xung đột xã hội và sự nổi dậy địa phương phải nỗ lực kiểm soát rất phức tạp [70].
Đồng thời, sự gia tăng nhanh chóng các đồn điền cao su ở đông bắc Thái Lan đã trở thành một mối quan tâm chính vì những khả năng tái xuất hiện bệnh sốt rét [144]. Một số vector sốt rét chính, chủ yếu là Anopheles dirus s.l., An. maculatus s.l., và An. minimus s.l., có thể thích ứng và sử dụng các đồn điền cao su ở nơi môi trường sống điển hình như các môi trường đồi và rừng tự nhiên [4]. Chú ý và theo dõi cẩn thận sự thay đổi sử dụng đất cùng với những thay đổi thời tiết và môi trường khác là điều cần thiết giúp phòng chống hoặc trì hoãn việc tái xuất hiện bệnh sốt rét ở khu vực dễ xảy ra.
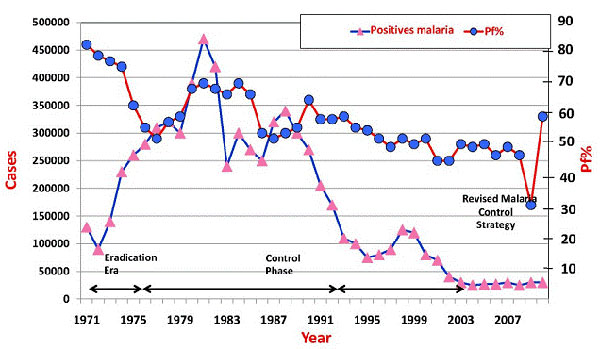 |
| Hình 5. Xu hướng bệnh sốt rét ở Thái Lan giai đoạn từ 1971‐ 010. |
Dựa vào các hoạt động giám sát sốt rét được ghi nhận ở Thái lan từ năm 1971‐2011, đỉnh mắc sốt rét xảy ra vào năm 1981 với tổng số ca mắc là 473.210 ca mắc và sau đó số ca mắc đã giảm mặc dù có sự gia tăng số ca mắc vào năm 1988 (349,291 ca mắc).
Nhìn chung, từ năm 1988 ‐ 2010, sốt rét đã giảm đáng kể [70],[143]. Mặc dù đạt được những thành tựu đáng kể trong kiểm soát sốt rét hơn 5 thập kỷ qua, nhưng số ca mắc sốt rét xảy ra hằng năm từ 25.000‐35.000 ca mắc [70]. Số ca mắc sốt rét trong năm 2010 là 32,502 ca, giảm 61.2% so với năm 2000.
 |
Tỷ lệ tử vong sốt rét cũng giảm đáng kể giảm từ 625 trường hợp tử vong trong năm 2000 xuống còn 80 ca tử vong trong năm 2010, giảm 87.2%. Sự suy giảm số ca mắc và tử vong là do thực hiện hiệu quả các biện pháp can thiệp gồm phun tồn lưu trong nhà và tẩm màn với hóa chất diệt côn trùng như là các biện pháp kiểm soát vector. Giảm sốt rét ở Thái Lan cũng là do các chương trình mở rộng và tiệp cận chẩn đoán và điều trị kịp thời ở những khu vực nông thôn cũng như chương trình giám sát bệnh đang hoạt động.
Vector sốt rét và sự đa dạng loài
Có khoảng 73 loài muỗi Anopheles spp. được ghi nhận ở Thái Lan. Các thành viên trong Nhóm Leucosphyrus, Nhóm Maculatus và Phức hợp loài Minimus được công nhận là những vector sốt rét quan trọng nhất ở Thái Lan [145],[146],[147],[148],[149].
Những kỹ thuật phân tử dựa trên phản ứng chuỗi polymerase (PCR) cho phép định loại chính xác các vector sốt rét quan trọng bao gồm loài anh chị [33,59]. Phức hợp loài Dirus, An. baimaii và An. dirus được xem là vector sốt rét chính ở Thái Lan [149]. Cả hai đều là muỗi sống trong rừng và bìa rừng được xem là những loài ưa thích đốt người (anthropophilic) [150[,[112],[149]. Tuy nhiên, một nghiên cứu gần đây cho thấy một số lượng lớn đáng kể An. dirus và An. baimaii thu thập từ các bẫy mồi gia súc so với thu thập bằng phương pháp mồi người, điều này chứng tỏ cả hai loài này cũng có thể có hành vi ưa đốt động vật [151].
Trong số các thành viên Nhóm Maculatus, 7 loài được báo cáo có mặt tại Thái Lan gồm An. maculatus, An. sawadwongporni, An. dravidicus, An. notanandai, An. willmori, An. pseudowillmori vàAn. rampae [152],[153],[154],[155],[147],[149],[156]. Anopheles maculatus và An. pseudowillmori lần lượt là những vector sốt rét quan trọng ở phía
An. minimus cũng là một vector sốt rét quan trọng và đang lan rộng ra khắp Thái Lan [161]. Nó là loài anh/chị em, An. harrisoni (trước đây là An. minimus C) xuất hiện giới hạn chỉ ở hai huyện của tỉnh Kanchanaburi, phía Tây Thái Lan nơi nó cũng xuất hiện cùng với An. minimus [162]. Trước đây Anopheles harrisoni được thu thập từ Mae Sot tỉnh Tak và Mae Rim ở tỉnh Chiangmai, phía bắc Thái Lan, nhưng hiện nay xác định không rõ ràng [149].
Một số vector sốt rét phụ khác cũng có mặt ở Thái lan. Những loài muỗi này có thể có liên quan chặc chẽ với người và bao gồm An. barbirostris s.l. và An. epiroticus (Phức hợp loài ‐ Sundaicus Complex) [163]. Trong phân nhóm An. barbirostris, An. campestris được xem là vector có khả năng truyền P. vivax ở Thái Lan [164]. Ngoài ra, dưới những điều kiện thích hợp An. karwari, An. philippinensis và An. tessellatus cũng được xem là vector xốt rét tiềm năng ở Thái Lan. Gần đây, An. cracens (Phức hợp Dirus) và An.latens (Phức hợp Leucosphyrus) đã cho thấy vector tự lan lan truyền P. knowlesi ở phía Nam Thái Lan [165],[166],[163]. Danh sách các loài vector sốt rét và các vector tiềm năng ở Thái Lan được trình bày trong bảng 2.
| Bảng 2. Các loài vector sốt rét đã biết và vector tiềm năng sốt rét ở Thái Lan. | ||||||||||||||||||||||||||||||||||||||||||||
| ||||||||||||||||||||||||||||||||||||||||||||
| +: vector sốt rét ‐: không phải vector sốt rét |
Tập tính muỗi sốt rét Anopheline
Những hiểu biết về tập tính của muỗi là hết sức quan trọng để hiểu dịch tễ học lan truyền bệnh và áp dụng hiệu quả các biện pháp kiểm soát vector. Hiểu rõ về sinh học muỗi, đặc biệt là tập tính đốt máu và ưa thích vật chủ để xác định loài trong nhóm loài hoặc phức hợp loài là cần thiết để giúp xác định vai trò từng loài cụ thể trong lan truyền bệnh ở những khu vực cụ thể và giúp các hoạt động phòng chống vector để thiết kế chiến lược thích hợp nhất nhằm giảm mật độ đốt. Nhiều quan sát chu kỳ đốt máu và ưa thích vật chủ của 3 phức hợp/nhóm, An. dirus, An. minimus, và An. maculatus đã được thực hiện ở Thái Lan [167],[168],[169],[170],[171],[172].
Tuy nhiên, những nghiên cứu tập tính và sinh thái trước đây dựa vào các quần thể muỗi được định loài chỉ dựa vào các đặc tính hình thể ngoài. Ngoài ra, các nghiên cứu vector đã được xác định loài Anopheles trong các phức hợp loài ở Thái Lan [150],[173],[161],[149]. Phát triển cơ sở hạ tầng và phá rừng dọc các biên giới quốc gia với các nước khác trong hai thập kỷ qua là lý do suy giảm đáng kể tỷ lệ mắc sốt rét, nhưng nhiều vector sốt rét đã xuất hiện và thích nghi thành công với thay đổi môi trường. Sử dụng các phương pháp phân tử cho phép các nhà điều tra miêu tả tập tính đốt mồi của mỗi loài trong phức hợp loài.
Ví dụ, hoạt động đốt mồi khác nhau của An. minimus và An. harrisoni được mô tả từ hai khu vực lưu hành sốt rét tỉnh Tak [143] và tỉnh Kanchanaburi [174]. Gần đây, hoạt động đốt mồi và ưa thích vật chủ của An. dirus và An. baimaii đã được mô tả ở tỉnh Kanchanaburi [151]. Điều tra rõ ràng hơn về sinh học, sinh thái học và tập tính đốt máu của các loài anh chị em ở cùng khu vực phân bố trong phức hợp có vai trò quan trọng trong y học, bây giờ có thể được tiến hành chính xác hơn.
Ảnh hưởng của thay đổi điều kiện môi trường đến vector sốt rét và lan truyền sốt rét
Hầu hết các loài côn trùng nhìn chung rất nhạy với sự thay đổi các môi trường và thời tiết như nhiệt độ xung quanh, độ ẩm tương đối, tốc độ gió và lượng mưa. Môi trường tự nhiên áp đặt những hạn chế đáng kể về số lượng côn trùng [175],[176]. Trong số các loài côn trùng đốt máu sống trong rừng mà lan truyền bệnh sang người thì muỗi được tìm thấy là nhạy cảm với sự thay đổi môi trường/thời tiết [144].Tuổi thọ, mật độ quần thể và sinh thái sự phân bố của bất kỳ loài muỗi nào có thể ảnh hưởng đáng kể bởi những thay đổi nhỏ trong các điều kiện môi trường và có sẵn những vật chủ thích hợp, môi trường sống bọ gậy và vị trí nghỉ của muỗi trường thành. Thay đổi các điều kiện môi trường ảnh hưởng trực tiếp do sự thay đổi và gia tăng sử dụng đất, chẳng hạn như chuyển đổi ruộng lúa sang các đồn điền trồng cao su, khu vực rừng đến môi trường đô thị hoá. Các hoạt động của con người là mối quan tâm lớn trong việc thay đổi mô hình các bệnh do vector truyền. Ví dụ, năm 1988 dịch sốt rét bùng phát lớn dọc biên giới Thái Lan‐Campuchia là do các cơ hội việc làm tạm thời từ hoạt động khai thác đá quý với gần 60.000 trường hợp mắc bệnh sốt rét được phát hiện trong nhóm dân cư này [4]. Tương tự như vậy, từ năm 1998 đến 2000 bùng phát dịch sốt rét xảy ra ở Làng Suan Ping, Tỉnh Ratchaburi, miền tây Thái Lan, trong một khu vực khai thác đá quý, nơi hầu hết lực lượng lao động được tuyển chọn từ Myanmar. Đợt bùng phát dịch này cho thấy rõ ràng rằng hoạt động con người gây ra và sự di dân có thể là một yếu tố quan trọng góp phần vào lan truyền bệnh.
Trong ba thập kỷ qua, các đồn điền cao su đã được mở rộng ở hầu hết các quốc gia Đông Nam Á, kể cả Thái Lan. Mặc dù Thái Lan là nước sản xuất cao su tự nhiên lớn, nhưng các đồn điền cao su này nhìn chung giới hạn ở miền Nam Thái Lan. Gần đây, cây cao su được trồng ở phía đông và đông bắc Thái Lan. Các đồn điền cao su được đặt ở những khu vực đồi núi rừng cung cấp môi trường sống tiềm năng cho một số vector chính như An.dirus và An. maculatus, đây là hai vector được tìm thấy phổ biến ở miền nam Thái Lan [161].
Việc mở rộng đồn điền cao su ở phía đồng bắc cũng đã được mở rộng nhiều cơ hội việc làm cho những công nhân nhập cư từ các quốc gia láng giềng thiếu nguồn lực lao động ở Thái Lan, hơn một triệu công nhân nhập cư được đăng ký từ các quốc gia láng giềng đã vào Thái Lan kể từ năm 2004 [144]. Điều này đã rõ ràng dẫn đến sốt rét di chuyển qua biên giới vào Thái Lan với tiềm năng tái xuất hiện lan truyền sốt rét ở những khu vực không có lan truyền sốt rét và sốt rét phục hồi và bùng phát ở những môi trường dễ bị nhiễm bệnh.
Tóm lại, những nỗ lực đang được chỉ đạo để tăng cường các hoạt động kiểm soát bệnh sốt rét dọc biên giới quốc tế của Thái Lan. Vấn đề sốt rét biên giới do sự di chuyển của con người vào Thái Lan, cả hợp pháp và không hợp pháp, được biết là rất phức tạp để kiểm soát. Ngoài ra, thay đổi sử dụng đất có một ảnh hưởng lớn đến sự lan truyền bệnh do vector truyền.
 |
Chú ý cẩn thận thay đổi sử dụng đất cùng với sự thay đổi khí hậu và môi trường là cần thiết để giúp dự báo và ngăn chặn sự tái xuất hiện bệnh sốt rét ở tất cả các khu vực của Thái Lan. Những nỗ lực hợp tác có hiệu quả giữa các quốc gia láng giềng với sốt rét xuyên biên giới đã được thực hiện để giảm thiểu lây truyền bệnh sốt rét liên tục cao trong những khu vực nhạy cảm này của Thái Lan
Kết luận
Trong nhiều năm tổ chức phòng chống và nghiên cứu sốt rét đã dẫn đến một số thành công đáng kể trong việc giảm tỷ lệ mắc bệnh sốt rét ở các quốc gia nằm ở khu vực đất liền SEA. Tuy nhiên, bệnh sốt rét vẫn là một nguy cơ lớn đối với sức khỏe cộng đồng nông thôn và vùng xa gần khu vực rừng và bìa rừng nơi mà các điều kiện kinh tế xã hội còn thấp, các khu vực khó khăn để đến và các hoạt động hàng ngày của người dân luôn gắng bó chặt chẽ hoặc phụ thuộc vào rừng để mưa sinh.
Những thay đổi ấn tượng và gần đây hơn trong hệ sinh thái địa phương tạo ra bởi các dự án phát triển, trong khi mục tiêu nâng cao mức sống của người dân địa phương, có thể có những ảnh hưởng sâu sắc và tiêu cực đối với sức khỏe con người và các bệnh do vector truyền. Ở hầu hết các nước, phá rừng và tái trồng rừng là một trong những yếu tố mạnh nhất liên quan đến các bệnh truyền nhiễm mới nổi và tái xuất hiện. Ví dụ, các đồn điền cao su có tác dụng làm tăng mật độ của các vector sốt rét quan trọng ở Thái Lan [75]. Đông Nam Á có tỷ lệ phá rừng cao nhất so với bất kỳ khu vực nhiệt đới chính nào trên thế giới và có thể làm cạn kiệt ba phần tư diện tích rừng nguyên sinh vào năm 2100, loại bỏ lên đến 42% đa dạng sinh học hệ động vật và thực vật [19]. Hầu hết các vector sốt rét chính xảy ra ở phần đất liền Đông Nam Á có liên quan đến rừng, do đó chúng ta có thể dự đoán những thay đổi về sự phân bố và mật độ quần thể của vector sốt rét, một số có thể biến mất trong khi vector phụ hoặc tiềm năng biến đổi để thích nghi với môi trường sống thay đổi để trở thành vector sốt rét chính trong tương lai.
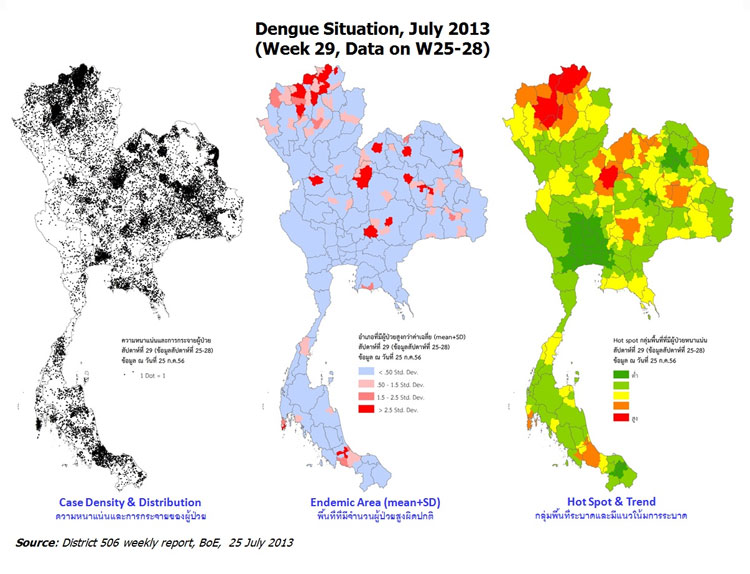
Hơn nữa, việc mở rộng khai thác và sử dụng tài nguyên thiên nhiên, cùng với các hình thức khác của phát triển kinh tế có thể giúp cải thiện điều kiện sống, trong khi cùng với đó là thay đổi môi trường theo những cách mà có thể làm tăng nguy cơ lây truyền bệnh sốt rét và các bệnh do vector truyền khác (ví dụ, sốt xuất huyết). Cùng với những thay đổi thói quen của con người, sự thích nghi của vector với môi trường thay đổi, bao gồm hành vi vector, có thể làm thay đổi sâu sắc động lực lan truyền bệnh sốt rét. Đây là một số thách thức được nêu ra bởi tất cả các nước để đạt được mục tiêu loại trừ bệnh sốt rét vào năm 2015 (Lào), 2020 (Việt
 |
Tuy nhiên, tương đối ít công việc đã được thực hiện để khai thác hành vi vector như một phương tiện để kiểm soát lan truyền bệnh (ví dụ, sử dụng các chất kích thích không gian để tác động lan truyền ngoài nhà, tìm kiếm các chất diệt côn trùng có nguồn gốc tự nhiên để bảo vệ môi trường).
Với những thay đổi dự kiến trong việc phân bố và dịch tễ học bệnh sốt rét, sẽ có một nhu cầu quan trọng để tiếp tục khám phá và phát triển các phương pháp can thiệp mới để bổ sung thêm cho chiến lược hiện có.
Tài liệu tham khảo
[1] World Health Organization. (2010). World malaria report. Nonserial Publication. World health Organization.pp.274. ISBN 13 9789241564403. Worldatlas.com http://www.worldatlas.com/ webimage/countrys/as.htm
[2] World Health Organization. (2011). World malaria report. Nonserial Publication. World Health Organization. pp.270. ISBN 9789241564403.http://www.int/malaria/ world_malaria_report_2011/9789241564403_eng.pdf.
[3] World Health Organization. (2012). World malaria report. Non serial Publication. World Health Organization. pp.260. ISBN ISBN 978 92 4 156453 3. http:// www.who.int/malaria/publications/world_malaria_report_2012/en/index.html
[4] Charoenviriyaphap, T. Bangs, M.J. & Ratanatham, S. (2000). Status of malaria in
[12] Cui, L. Yan, G., Sattabongkot,J., Cao, Y., Chen, B., Chen, X., Fan, Q., Fang, Q., Jongwutiwesi, S., Parker, D., Sirichaisinthop, J., Kyaw, M.P., Su, X.Z., Yang, H., Yang, Z., Wang, B., Xu, J., Zheng, B., Zhong, D. & Zhou, G. (2012). Malaria in the Greater Mekong Subregion: Heterogeneity and complexity. Acta Tropica, Vol. 212, pp. 227‐239.ISSN:0001‐706X.
[16] Somboon, P. Aramrattana, A., Lines, J. & Webber, R., 1998. Entomological and epidemiological investigations of malaria transmission in relation to population movements in forest areas of north‐west
Medicine and Public Health, Vol. 29 pp3‐9.
[33] Manguin S.; Garros, C., Dusfour,
subgenus Cellia in
[39] Harbach, R. E. (2011). Anopheles classification. Mosquito Taxonomic Inventory
(http://.mosquito‐taxonomic‐inventory.info/). accessed o­ n 20 January 2013.
[44] Dusfour, I. ; Michaux, J. R., Harbach, R. E., Manguin, S. (2007). Speciation and phylogeography of the Southeast Asian Anopheles sundaicus complex. Infectious Genet Evol, Vol. 7, pp. 484‐93.
[46] Dusfour,
[47] World Health Organization. (2009). World malaria report. Nonserial Publication.
World Health Organization. pp.78. ISBN 9789241563901.http://whqlibdoc.who.int/ publications/2009/9789241563901_eng.PDF.
[59] Sinka, M. E. Bangs, M. J., Manguin, S., Chareonviriyaphap, T., Patil, A. P., Temperley, W. H., Gething, P. W., Elyazar, I. R., Kabaria, C. W., Harbach, R. E. & Hay, S. I. (2011). The dominant Anopheles vectors of human malaria in the Asia‐Pacific region: occurrence data, distribution maps and bionomic précis. Parasite & Vectors, Vol. 4, pp. 89.
[70] Ministry of Public Health [MOPH], (2011). Annual Malaria Reports. Malaria Division, Department of Communicable Disease Control. Ministry of
[75] Yasuoka, J. & Levins, R. (2007). Impact of deforestation and agricultural development on anopheline ecology and malaria epidemiology. American Journal of Tropical Medicine and Hygiene. Vol. 70, No. 3, pp. 450‐460. ISSN 0002‐9637.
[77] Patz, J.A. Graczyk, T.K., Geller, N. & Vittor, A.Y. (2000). Effects of environmental change on emerging parasiticdiseases. International Journal for Parasitology, Vol. 30, pp.1395‐1405.
[85] World Health Organization. (2008). WHO Mekong Malaria programme, Malaria in the Greater Mekong Subregion: Regional and Country Profiles. World Health Organization,
[93] Department of Statistics,
[94] Ministry of Health (MOH). (2001). Vector‐borne Disease Control Programme.
[95] Ali, W.N. Ahmad, R., Nor, Z.M., Ismail, Z. &Lim, L.H. (2011). Population dynamics of adult mosquitoes (Diptera: Culicidae) in malaria endemic villages of Kuala Lipis,
[96] Rahman, W.A. Adanan, C.R. & Abu Hassan, A. (1997). Malaria and Anopheles mosquitoes in
[97] Asian Collaborative Training Network for Malaria (ACTMalaria). Country updates
[98] Jayakumar, G. (2006). Pre‐employment medical examination of migrant workers—The ethical and illegal issues. Med J
[99] Vijayakumari, K. (2006). Towards an East Asian cooperation framework for migrant labor. Migrant workers in
[100] White, N. J. (2008). Plasmodium knowlesi: the fifth human malaria parasite. Clinical Infectious Diseases, Vol. 46, No. 2, pp. 172‐173.
[101] Vythilingam,
[102] Vythilingam, I. Noorazian, Y.M., Huat, T.C., Jiram, A.I., Yusri, Y.M., Azahari, A.H., Norparina,
[103] Vythilingam,
[104] Becker, N. Petric, D., Zgomba, M., Boase, C., Madon, M., Dahl, C. & Kaiser, A. (2010). Mosquitoes and their control. Springer,
[105] Seleena, P. Lee, H.L., Chooi, K.H. & Junaidih, S. (2004). Space spraying of bacterial and chemical insecticidesagainst Anopheles balabacensis Baisas for the control of malaria in Sabah,
[106] Reid, J.A. (1968). Anopheline mosquitoes of Malaya and
[107] Baimai, V. Kijchalao, U., Rattanarithikul, R. & Green,
[108] Vythilingam,
[109] Rohani.A. Wan Najdah, W.M., Zamree, I., Azahari, A.H., Mohd Noor, I., Rahimi, H. & Lee, H.L. (2010).Habitat characterization and mapping of Anopheles maculatus (Theobald) mosquito larvae in malaria endemic areas in Kuala Lipis, Pahang, Malaysia. Southeast Asian Journal of TropicalMedicine andPublic Health. Vol.41, pp. 821‐30.
[110] Miyagi, I. & Toma, T. (2000).The mosquitos of
[111] Chooi, C.K. (1985). Status of malaria vectors in
[112] Baimai, V. Kijehalao, U., Sawadwongporn, P. & Green, C. A. (1988). Geographic distribution and biting behaviour of four species of the Anopheles dirus complex (Diptera: Culicidae) in
[113] Oo, T.T. Storch, V. & Becker, N. (2002). Studies on the bionomics of Anopheles dirus (Culicidae: Diptera) in Mudon,
[114] Prakash, A. Bhattacharyya, D.R. Mohapatra, P.K., & Mahanta, J. (2002). Physicochemical characteristics of breeding habitats of Anopheles dirus (Diptera: Culicidae) in
[115] Chang, M.S. Hii, J., Buttner, P. & Mansoor, F. (1997). Changes in abundance and behaviour of vector mosquitoes induced by land use during the development of an oil palm plantation in
[116] Manguin, S. Bangs, M.J., Pothikasikorn, J. & Chareonviriyaphap, T. (2010). Review on global cotransmission of human Plasmodium species and Wuchereria bancrofti by Anopheles mosquitoes. Infect. Genet. Evol. Vol.10, pp. 159‐177.
[117] Linton, Y.M. Dusfour, I, Howard, T.M., Ruiz, L., Nguyen, D.M., Trung, H.D., Sochantha, T., Coosemans, M., & Harbach, R.E. (2005). Anopheles (Cellia) epiroticus (Diptera: Culicidae), a new malaria vector species in the Southeast Asian Sundaicus Complex. Bulletin of Entomological Research. Vol 95, pp. 329‐339
[118] Meek, S.R. (1995). Vector control in some countries of
[119] Vythilingam,
[120] Hii, J.L.K. & Vun, Y.S. (1985). A study of dispersal, survival and adult population estimates of malaria vector, Anopheles balabacensis Baisas (Diptera: Culicidae) in
[121] Hii, J.L.K.
[122] Chen, B. Butlin, R.K. & Harbach, R.E. (2003). Molecular phylogenetics of the Oriental members of the Myzomyia Series of Anopheles subgenus Cellia (Diptera: Culicidae) inferred from nuclear and mitochondrial DNA sequences. Syst Entomol. Vol. 28, pp. 57‐69.
[123]
[124] Colless, D.H. (1956).The Anopheles leucosphyrus group. Trans R Entomol Soc Lond, Vol. 108, pp. 37‐116.
[125] De Las Llagas, L. A. (1985). Impact of ecological changes o­ n Anopheles vectors of malaria in some countries of
[126] Cheong, W.H. (1983). Vectors of filariasis in
[127] Kritsiriwuthinan, K. & Ngrenngarmlert, W. (2011). Asymptomatic malaria infections among foreign migrant workers in
[128] Kumar, A. Chery, L., Biswas,C., Dubhashi, N., Dutta, P., Duaf, V. K., Kacchap, M., Kakati,S., Khandeparkar, A., Kour, D., Mahajan, S.N., Maji, A., Majumder, P., Mohanta, J., Mohapatra, P. K., Narayanasamy, K., Roy, K., Shastri, J., Valecha, N., Vikash, R., Wani, R., White, J. & Rathod, P. K. (2012). Malaria in
[129] Moon, S.U. Lee, H.W., Kima, J.Y., Na, B.K., Cho, S. H., Lin, K., Sohn, W. M. & Kim, T. S. (2009). High frequency of genetic diversity of Plasmodium vivax field isolates in
[130] World Health Organization. (2005). Overview of malaria control activities and programme progress: Country profile
[131] National Malaria Control Programe. (2010). Malaria situation in
[132] Ministry of Health. (2010).
[133] Sermwittayawong, N. Singh, B., Nishibuchi, M., Sawangjaroen, N. & Vuddhakul. V. (2012). Human Plasmodium knowlesi infection in Ranong province, southwestern border of
[134] Than, M. Kyaw M.P., Soe A.Y, Gyi K.K., Sabai M.& Oo M. (1995). Development of resistance to Chloroquin by Plasmodium vivax in
[135] World Health Organization/ Roll Back Malaria. (2001). The use of antimalaria drugs: Report of an Informal Consultation. World Health Organization,
[136] Oo, T.T. Storch, V. & Becker, N. (2004). Review of the anopheline mosquitoes of
[137] Paing, M. A.A. Sebastain, and T. Lin. (1988). Behavior of Anopheles minimus in relationship to its role as vector of malaria in a forested foothill area of
[138] Paing, M. (1989). Anopheline mosquitoes of Myanmar II. Anopheles minimus Theobald, 1901.
[139] Oo, T.T. (2003). The biology and vector competence of the Anopheline mosquitoes of
[140] Lee, C.I. Smith, L.S., Shwe Oo,E.K., Scharschmidt, B.C., Whichard, E., Thart Kler, T., Lee, J. & Richards, A.K. (2008). Internally displaced human resources for health: villager health worker partnerships to scale up a malaria control programme in active conflict areas of eastern
[141] Patz, J. A. & Norris, D. E. (2004). Land use change and human health. In: De Fries, R., Asner, G., & Houghton, R., editors, Ecosystems and land use change, Vol. 153, pp. 344. American Geophysical Monograph Series.
[142] Keiser, J. Utzinger, J., & Tanner, M. (2005). The effect of irrigation and large dams on the burden of malaria on global and regional scale. American Journal of Tropical Medicine and Hygiene, Vol. 72, No. 4, pp. 392‐406.
[143] Tisgratog, R. Tananchai, C., Juntarajumnong, W., Tuntakom, S., Bangs, M.J., Corbel, V., & Chareonviriyaphap, T. (2012). Host feeding patterns and preference of Anopheles minimus (Diptera: Culicidae) in a malaria endemic area of western
[144] Petney, T., Sithithaworn, P., Satrawaha, R., Warr, C.G., Andrews, R., Wang, Y.C., Feng, C. (2009). Potential malaria reemergence, northeastern
[145] Green
[146] Gould, D.J. Esah, S. & Pranith, U. (1967). Pelation of Anopheles aconitus to malaria transmission in the central plain of Thailand. Transaction Royal Society of Tropical Medicine Hygiene, Vol. 31, pp. 441‐442.
[147]
[148] Maheswary, N.P. Khan, Z., Molla, F.R., & Haq, M.I. (1993). Incrimination of Anopheles annularis van der Wulp1854 [sic] as an epidemic malaria vector in
[149] Rattanarithikul, R., Harrison, B.A., Harbach, R.E., Panthusiri, P., Coleman, R.E. (2006). Illustrated keys to the mosquitoes of Thailand IV. Anopheles. Southeast AsianJournal of Tropical Medicine and Public Health, Vol. 37, pp. 1‐128.
[150] Baimai, V. Andre, R.G.,
[151] Tananchai, C. Tisgratog, R., Juntarajumnong, W., Grieco, J.P., Manguin, S., Prabaripai, A., & Charonviriyaphap, T. (2012). Species diversity and biting activity of Anopheles dirus and Anopheles baimaii (Diptera: Culicidae) in a malaria prone area of western
[152]
[153] Rattanarithikul, R.,
[154] Rattanarithikul, R., Harbach, R.E. (1990). Anopheles maculatus (Diptera: Culicidae) from the type locality of
from the
[155] Kittayapong, P.
[156] Somboon P. Thongwat, D., Morgan, K. & Walton, C. (2008). Crossing experiment of Anopheles maculatus form K and Anopheles willmori (James) (Diptera: Culicidae). Parasitol Research. Vol. 103(6), pp.1317‐22.
[157] Ministry of Public Health [MOPH], (2005). Annual Malaria Reports. Malaria Division, Department of Communicable Disease Control. Ministry of
[158] Coleman, R.E. Sithiprasasna, R., Kankaew, P., Kiaattiu,t C., Ratanawong, S., Khuntirat, B. & Sattabongkot, J. (2002). Naturally occurring mixed infection of Plasmodium vivax VK210 and P. vivax VK247 in Anopheles minimus and An. maculatus (Diptera: Culicidae) in western
[159] Upatham, E.S. Prasittisuk, C., Ratanatham, S., Green,
[160] Muenworn, V. Sungvornyothin, S., Kongmee, K., Polsomboon, S., Bangs, M.J., Akrathanakul, P., Tanasinchayakul, S., Prabaripai, A., & Chareonviriyaphap, T. (2008). Biting activity and host preference of the malaria vectors Anopheles maculatus and Vector Biology and Malaria Transmission in Southeast Asia Anopheles sawadwongporni (Diptera: Culicidae) in Thailand. Journal of Vector Ecology, Vol. 34, pp. 62‐69.
[161] Baimai, V. (1989). Speciation and species complexes of the Anopheles malaria vectors in
[162] Kengluecha, A. Rongnoparut, P., Boonsuepsakul, S., Sithiprasasna, R., Rodpradit, P., & Baimai, V. (2005). Geographical distribution of Anopheles minimus species A and C in western
[163] Saeung,T. (2012). Anopheles (Diptera: Culicidae) species complex in
[164] Thongsahuan S. Baimai, V., Junkum, A., Saeung, A., Min, G.S., Joshi, D., Park, M.H., Somboon, P., Suwonkerd, W., Tippawangkosol, P., Jariyapan, N. & Choochote, W. (2011). Susceptibility of Anopheles campestris‐like and Anopheles barbirostris species complexes to Plasmodium falciparum and Plasmodium vivax in
[165] Jongwutiwes, S. Buppan, P., Kosuvin, R., Seethamchai, S., Pattanawong, U., Sirichaisinthop J. & Putaporntip C. (2011). Plasmodium knowlesi malaria in humans and macaques,
[166] Putaporntip, C. Hongsrimuang, T., Seethamchai, S., Kobasa, T., Limkittikul, K., Cui, L., Jongwutiwes, S. (2009). Differential prevalence of Plasmodium infections and cryptic Plasmodium knowlesi malaria in humans in
[167] Ismail, I.H.A. Notananda, V., and Schepens, J. (1974). Studies on malaria and response of Anopheles balabacensis balabacensis and Anopheles minimus to DDT residual spraying in
[168] Harbach, R.E. Gingrich, J.B., & Pang, L.W. (1987). Some entomological observations on malaria transmission in a remote village in northwestern
[169] Ratanatham, S., Upatham, E.S., Prasittisuk, C., Rojanasunan, W., Theerasilp, N., Tremongkol, A., Viyanant, V. (1998). Bionomics of Anopheles minimus and its role in malaria transmission in
[170] Rattanarithikul, R. Linthicum, K.J., Konish, E. (1996). Seasonal abundance and parity rates of Anopheles species in southern
[171] Rwegoshora, R.T. Sharpe, R.G., Baisley, K.J., Kittayapong, P. (2002). Biting behavior and seasonal variation in the abundance of Anopheles minimus species A and C in Southeast Asian Journal of Tropical Medicine and Public Health, Vol. 33, pp. 694‐701.
[172] Chareonviriyaphap, T. Prabaripai, A., Bangs, M.J. & Aum‐Aung, B. (2003). Seasonal abundance and blood feeding activity of Anopheles minimus Theobald (Diptera: Culicidae) in
[173] Baimai, V. Kijehalao, U., Sawadwongporn, P. & Green, C. A. (1988). Geographic distribution and biting behaviour of four species of the Anopheles dirus complex (Diptera: Culicidae) in
[174] Sungvornyothin, S. Muenvorn, V., Garros, C., Prabaripai, A., Bangs, M.J., Manguin, S., & Chareonviriyaphap, T. (2006). Trophic behavior and biting activity of the two sibling species of the Anopheles minimus complex in western
[175] Patz, J.A., Martens, W.J., Focks. D.A. & Jetten, TH. (1998). Dengue fever epidemic potential as projected by general circulation models of global climate change. Environ Health Perspect. Mar Vol 106 No. 3, pp.147‐53.
[176] Suwannachote, N. Grieco, J.P., Achee, N.L., Suwonkerd, W., Wongtong, S., & Chareonviriyaphap, T. (2009). Effects of environmental conditions on the movement patterns of Aedes aegypti (Diptera: Culicidae) into and out of experimental huts in